Der Körper als Biotop-System (FORSCH-0211, v1.4)
Der Körper als Biotop-System
Milieu, Grenze und die Disziplin einer Beschreibungsweise
Werk-ID: FORSCH-0211 (vergeben 2026-06-10 nach Register-Doublecheck; ehemals 0117 / PENDING) Werktyp: Rahmen-Werk (organübergreifend), Beschreibungsebene Version: v1.4 (Vollfassung, bilingual DE/EN; konzeptuelles Schaubild der Milieu-Kette ergänzt) Methodik: WERKSTATTLINIE v2.0 Datum: 2026-06-18
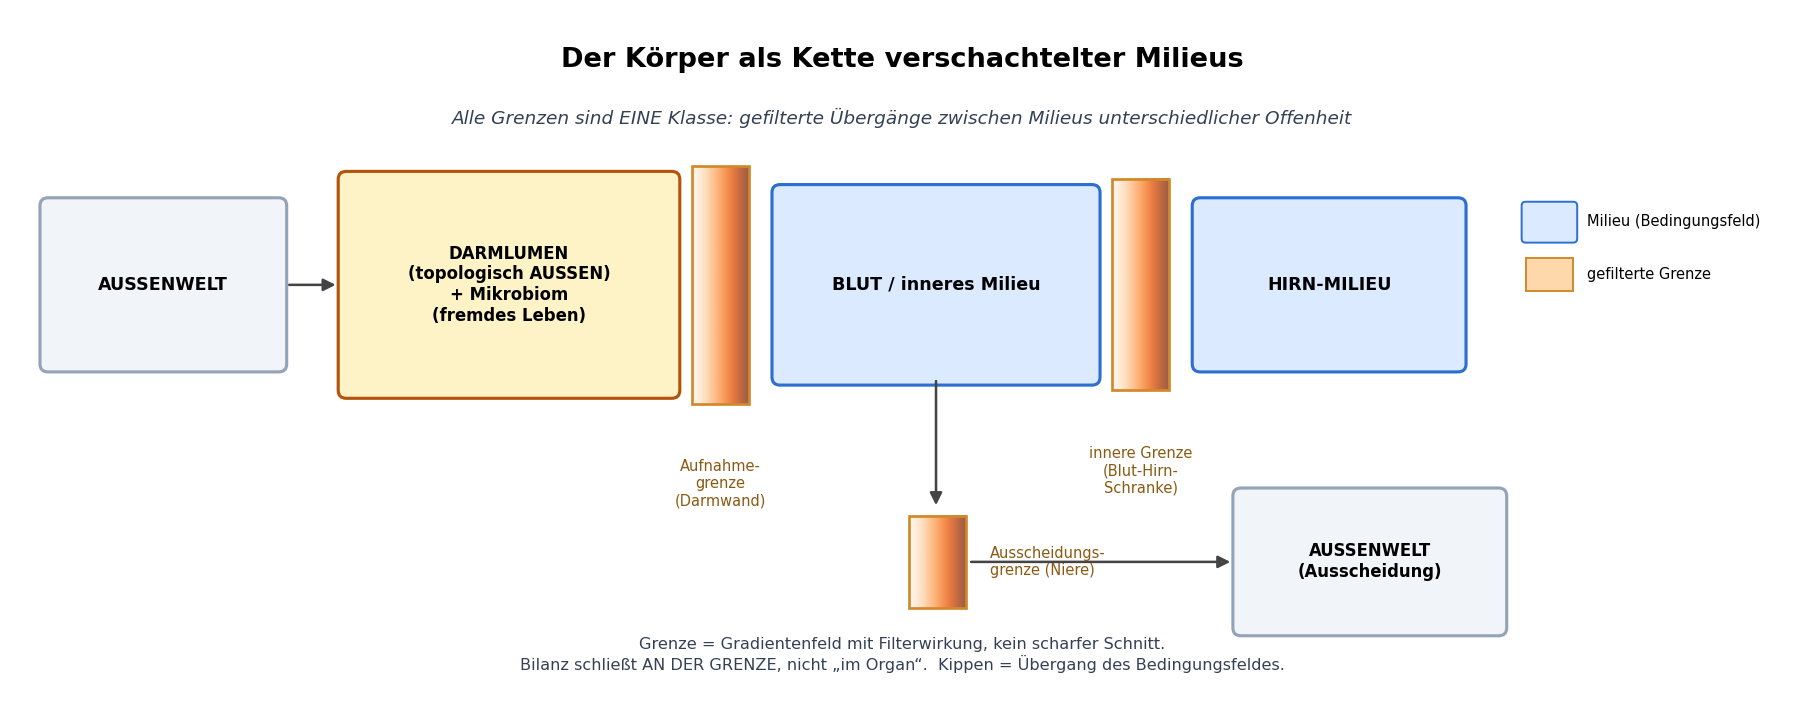
Änderungen ggü. v1.3: Ein konzeptuelles Schaubild (Abb. 1, §4) ergänzt: die Kette verschachtelter Milieus mit gefilterten Grenzen — Außenwelt → Darmlumen (topologisch außen, mit Mikrobiom) → Aufnahmegrenze → Blut → Blut-Hirn-Schranke → Hirn, samt Ausscheidungsgrenze. Es macht die Kernthese (alle Grenzen = eine Klasse; Bilanz schließt an der Grenze) auf einen Blick sichtbar. Keine inhaltliche Aussage geändert.
Änderungen ggü. v1.2: §8.1 ist kein offener Test mehr, sondern ausgeführt. Ein minimales gekoppeltes Milieu-Modell (Anhang A) bestätigt das Kriterium: bei konstanten Transferraten hat das System einen stabilen Zustand (Kollaps in die Pharmakokinetik); bei bedingungsabhängigen Raten zeigt es ein bistabiles Fenster und Hysterese — also ein Kippen, das kein Modell mit konstanten Raten reproduziert. §8 und §7 berichten dieses Ergebnis. (Die v1.2-Änderungen — Zirkularitäts-Kriterium §3, Einordnung/Übertragbarkeit §4.1, entscheidbares §8-Kriterium, zweite Canguilhem-Stütze §2 — bleiben erhalten.)
v1.1 (2026-06-11) und v1.2 (2026-06-16) bleiben als vorige Vollfassungen versionsabgeschlossen. v1.3 löst sie als Upload-Kandidat ab; sie führt den §8.1-Test aus und berichtet das Ergebnis, keine frühere Aussage wird zurückgenommen.
0 · Stellung des Werks
Dieses Werk hebt einen Gedanken aus FORSCH-0111 §5b heraus und stellt ihn auf eigene Füße. In 0111 diente die Biotop-Betrachtung als kompakter Rahmen für eine begrenzte Frage: wie eine psychoaktive Substanz im Körper versorgt, verteilt und am Wirkort umgesetzt wird. Der Gedanke trägt weiter als diese eine Frage. Er betrifft, wie Stoffwirkung und Steuerung im Körper überhaupt beschrieben werden, und damit eine Wahl der Beschreibungsweise, die der Sache vorausgeht.
FORSCH-0111 §5b bleibt versionsabgeschlossen als Keimzelle erhalten. Dieses Werk zitiert es und baut darüber hinaus: Es ordnet den Gedanken begrifflich ein (Canguilhems Milieu-Begriff), prüft ihn an der biologischen Literatur (Darm als unvollständig durchmischter Bioreaktor), und grenzt ihn gegen seine eigene Übertreibung ab (die Holobiont-Ontologie-Debatte). Es verbindet sich zudem mit dem parallel entstandenen Strang „Transport als Rauschen unter Zwang", der dieselbe Lehrbuch-Kritik auf der molekularen und zellulären Ebene führt.
1 · Der Vorschlag und seine Frageform
Statt den Körper als Ansammlung von Organen zu beschreiben — die Leber leistet X, das Gehirn leistet Y, der Darm leistet Z — wird er als System ineinandergeschachtelter Milieus betrachtet. Jedes Organ, jedes Kompartiment ist ein Milieu mit eigenen Bedingungen. Die Milieus sind verschachtelt und gekoppelt. Das System ist an definierten Grenzen nach außen offen.
Die Verschiebung sitzt nicht im Gegenstand, sondern in der Frageform. Die Organ-Sprache legt Zuständigkeiten nahe, als hätte jedes Organ eine Aufgabe, die es erledigt, wie eine Abteilung in einem Betrieb. Diese Frageform sucht einen Eigentümer eines Effekts: „Welches Organ steuert X?" hat dieselbe Bauform wie „Wem gehört dieser Vorgang?". Die Milieu- oder Biotop-Sicht fragt anders. Sie fragt nicht, wer zuständig ist, sondern welche Bedingungen wo herrschen und wie sie ineinander übergehen. Das ist die Leitformel des Werks: Bedingungsfelder statt Zuständigkeiten.
Die Pointe ist nicht stilistisch. Die beiden Frageformen führen zu verschiedenen Antworten und machen verschiedene Dinge sichtbar. Wer nach Zuständigkeit fragt, sucht ein Organ und endet bei einem Namen. Wer nach Bedingungen fragt, sucht ein Milieu und endet bei einem Verhältnis.
2 · Begriffliches Fundament: das Milieu (Canguilhem)
Der Begriff „Milieu" ist nicht beliebig gewählt. Georges Canguilhem hat ihn für die Biologie und Medizin so gefasst, dass er genau die hier benötigte Doppelstruktur trägt. Bei Canguilhem bezeichnet das Milieu die Umgebung eines Lebewesens, zugleich aber — dem Wortsinn nach mi-lieu, der Mittelort — das Zentrum dieser Umgebung. Das Lebewesen lebt inmitten seiner Umgebung. Canguilhems Fassung ist von Jakob von Uexkülls Begriff der Umwelt geprägt: dem für ein Lebewesen je eigenen, bedeutungshaltigen Ausschnitt seiner Umgebung. Entscheidend für dieses Werk ist die Erweiterung, die Canguilhem vornimmt: Dieselbe Beziehung gilt nach innen. Der Organismus ist das Milieu, in dem Gewebe und Organe situiert sind; das Verhältnis zwischen Organismus und Umwelt ist dasselbe wie das zwischen den Teilen und dem Ganzen eines Organismus.
Diese Symmetrie ist das begriffliche Rückgrat des vorliegenden Werks. Sie erlaubt, äußere und innere Grenzen als denselben Typ Verhältnis zu behandeln, ohne die Ebenen zu vermischen. Die Symmetrie ruht zentral auf dieser einen Stelle; sie hängt jedoch nicht an einem einzigen Satz. Sie wird durch Canguilhems Normativitäts-Strang (The Normal and the Pathological) gestützt, in dem das nach-innen-gewandte Verhältnis von Organismus und Teilen als Fähigkeit eines Lebewesens wiederkehrt, in seinem Milieu normal zu sein. Das Rückgrat hat also einen zweiten Stützpunkt: Das Lebewesen ist normal in einem Milieu, sofern es die morphologische und funktionale Lösung darstellt, die das Leben als Antwort auf die Anforderungen dieses Milieus gefunden hat. Normalität ist keine statistische Konstante, sondern eine Fähigkeit zur Anpassung an ein veränderliches Milieu. Das verbindet die Biotop-Sicht mit der Frage von Gesundheit und Kippen (§5): Ein Milieu, das in einen anderen stabilen Zustand übergeht, verändert die Bedingungen, unter denen seine Bewohner normal sein können.
Über Canguilhem führt eine Linie zu Foucault, der den politischen Milieu-Begriff aus Canguilhems Lektüre von Lamarck und Newton entwickelt und ihn für die Theorie der Sicherheit und der Bevölkerung aufnimmt (Vorlesung „Security, Territory, Population", 1977–1978). Diese Linie ist im Grenzregime-Cluster (FORSCH-0119 ff.) bereits ausgearbeitet; sie wird hier als Knoten markiert, nicht erneut entfaltet. Wichtig ist die Konsistenz: Derselbe Milieu-Begriff trägt von der Zelle über den Organismus bis zur sozialen Steuerung, ohne dass eine Ebene auf die andere reduziert würde.
3 · Warum die Biotop-Sicht für die Steuerungs- und Versorgungsfrage trägt
Die Biotop-Sicht vermeidet strukturell den Zuständigkeits-Fehler und macht die Verhältnis-Natur der Vorgänge sichtbar. Vier Beobachtungen aus FORSCH-0111 stützen das im konkreten Fall.
Erstens: Ein Stoff-„Pool" ist kein Organ, sondern ein Milieu. Getrennte Milieus — etwa das Darm-Kompartiment und das Hirn-Kompartiment des Serotonin-Haushalts — sind durch eine selektiv durchlässige Grenze getrennt, nicht durch eine Organgrenze im anatomischen Sinn.
Zweitens: Ein steuerndes Organ stellt nicht wie ein Befehlsgeber Befehle aus, sondern als Milieu Bedingungen ein. Die Leber „steuert" den Serotonin- und Tryptophan-Haushalt nicht durch Anweisung, sondern indem sie Albumin, Glukose und das Tryptophan-Verhältnis einstellt — Bedingungen, die andere Milieus vorfinden und auf die sie reagieren.
Drittens: Eine Wirkung schließt ihre Bilanz dort, wo die Bedingungen eines Milieus es zulassen, nicht „in einem Organ". Das ist die Bilanz-Logik aus FORSCH-0111 §5a: Die chemische Bilanz schließt sich nicht immer am Wirkstoff, sondern unter Umständen am Enzym oder am Transporter, also an einer Bedingung des Milieus.
Viertens: Das Kippen von reversibel zu irreversibel ist ein Milieu-Phänomen. Ein Milieu geht in einen anderen stabilen Zustand über, wie ein See umkippt. Dieser Befund verbindet sich mit Canguilhems Normalitätsbegriff: Das Kippen ist nicht der Defekt eines Organs, sondern der Übergang eines Bedingungsfeldes in einen Zustand, in dem die vorherige Normativität nicht mehr trägt.
Eine Anmerkung gegen die Zirkularität. Zu sagen, die Bilanz schließe „dort, wo die Bedingungen eines Milieus es zulassen“, wäre leer, wenn ein Milieu nur dadurch bestimmt würde, wo die Bilanz schließt. Das ist nicht der Fall. Ein Milieu wird vorab und unabhängig abgegrenzt, durch eine messbare Schwelle im Gradientenfeld: einen steilen Wechsel einer physikochemischen Größe (Sauerstoff, pH, Osmolarität) oder eine Permeabilitätsgrenze, die auswählt, was übertreten darf. Die Grenze wird zuerst durch diese Schwellen festgelegt; erst danach wird gefragt, wo die Bilanz schließt. Die Aussage „die Bilanz schließt an einer Bedingung des Milieus” ist damit gegen eine unabhängig gezogene Grenze prüfbar, nicht selbstbestätigend.
4 · Erste Achse: die innere Grenze als gleiche Art Ding
Die Grenzen, die im Versorgungsfall betrachtet wurden, sind nicht jeweils Spezialfälle, sondern Exemplare einer Klasse: Übergänge zwischen Milieus unterschiedlicher Offenheit. Drei Typen treten auf. Aufnahme-Grenzen — Mund, Lunge, Darmwand, Haut — lassen kontrolliert Außenwelt herein. Ausscheidungs-Grenzen führen kontrolliert aus. Innere Grenzen, etwa die Blut-Hirn-Schranke, trennen zwei innere Milieus voneinander.
Diese Grenzen sind von derselben Art: gefilterte, selektive Übergänge. Daraus folgt eine Neuordnung der Bewegung eines Stoffes durch den Körper. Sie ist keine Passage durch einen homogenen Innenraum, sondern eine Bewegung durch eine Kette von Milieus, an jeder Grenze gefiltert und umgestellt. Diese Lesart deckt sich mit dem parallel entwickelten Strang „Transport als Rauschen unter Zwang", der zeigt, dass Lehrbuchdarstellungen oft scharfe Grenzen und gerichtete Pfeile zeichnen, wo nur emergente Statistik herrscht. Die Biotop-Grenze ist kein scharfer Schnitt, sondern ein Gradient mit Filterwirkung.
4.1 · Andockpunkt A1 ausgeführt: die Topologie der Offenheit
Der schärfste Teil der ersten Achse ist topologisch. Das Darmlumen ist nicht „innen". Es ist topologisch Außenwelt — ein Schlauch, der den Körper durchquert. Was im Darmlumen liegt, ist noch nicht aufgenommen; es befindet sich auf der Außenseite einer durchgehenden Grenzfläche, die von Mund bis After reicht. Aufnahme ist der Übertritt von dieser topologischen Außenseite in ein inneres Milieu. Diese Topologie ist selbst kein neuer Befund — dass der Verdauungstrakt ein den Körper durchquerender Schlauch ist, ist Lehrbuch. Was das Werk hinzufügt, ist die Einordnung: Die Darmgrenze wird unter die eine Klasse gefilterter Milieu-Übergänge (§4) eingereiht, nicht als Sonderfall behandelt.
Die biologische Literatur stützt und präzisiert diesen Punkt, wobei die einschlägigen räumlichen Befunde aus Maus-Modellen stammen und entsprechend als modellgestützt zu lesen sind. Die Trennung zwischen Darmlumen und wandnaher Zone wird nicht als Schichtung scharf getrennter Kompartimente verstanden, sondern — für den Dickdarm der gnotobiotischen Maus — als unvollständig durchmischter Bioreaktor: Lumen und wandnahe Region sind auf Mikrometer-Skala vermischt, mit unterschiedlichen räumlichen Verteilungen einzelner Taxa (Welch et al., PNAS 2017, an einer 15-Spezies-Modellgemeinschaft). Die Grenze ist also real und funktional — sie kontrolliert, welche Bakterien sich dem Epithel nähern können — aber sie ist ein Gradientenfeld, kein Schnitt. Physikochemische Gradienten (Sauerstoff, pH, kurzkettige Fettsäuren wie Butyrat) bestimmen die Besiedlung; im murinen Zäkum geht die Kompartimentierung zwischen Lumen und Krypten bei physiologischem Stress — Operation samt präoperativem Fasten und Antibiotika — verloren (Zaborin et al., mSystems 2020). Das ist die Biotop-Logik in der Empirie: Bedingungsfelder mit Gradienten, deren Kippen die Ordnung verändert. Da diese räumlichen Befunde murin sind, ist ihre Übertragung auf den menschlichen Darm selbst eine Hypothese, kein gesicherter Fakt; sie werden hier als modellebene Illustration der Biotop-Logik genutzt, nicht als direkter Beleg am Menschen.
Ein zweiter topologischer Punkt: Das Mikrobiom ist fremdes Leben innerhalb der Kette. Im Darm — also topologisch außen, aber innerhalb der Körpergrenzen — lebt eine fremde Population, deren Stoffwechsel in die Bedingungen des Wirts eingreift. Der Körper ist nicht einmal biologisch rein „einer". Das schärft die erste Achse: Die Grenzen ordnen nicht nur Stoffflüsse, sondern auch Lebensräume verschiedener Bewohner.
5 · Zweite Achse: selektive Offenheit nach außen
Ein Biotop ist definitionsgemäß nach außen offen. Es hat Stoff- und Energieflüsse über seine Grenzen, sonst wäre es kein Lebensraum, sondern ein toter Kasten. Der Körper ist in diesem präzisen Sinn offen: an den Aufnahmegrenzen, an den Ausscheidungsgrenzen und über das Darmlumen als topologische Außenwelt.
Diese Offenheit ist selektiv und gefiltert. Sie besteht in kontrollierten Übergängen an definierten Grenzen, nicht in einer Verschmelzung mit der Umwelt. Gerade die Filterfunktion macht die Grenzen zum interessanten Gegenstand. Die Aussage „der Körper ist nach außen offen" ist also präzise und nicht esoterisch, sofern man sie stofflich und topologisch liest: definierte Tore, gefilterte Übergänge, kontrollierte Bilanzen.
5.1 · Andockpunkt A2 ausgeführt: die Bilanz über die Grenzen
Organübergreifend gelesen ergibt sich eine durchgehende Bilanz-Struktur. Jedes innere Milieu führt eine Bilanz über seine Grenzen: Was kommt herein, was geht hinaus, was wird umgesetzt. Die Leber bilanziert Nährstoffe und Metaboliten gegen das Blutmilieu; die Niere bilanziert Wasser, Elektrolyte und Ausscheidungsprodukte gegen das Außen; die Lunge bilanziert Gase. Diese Bilanzen sind gekoppelt — die Ausgangsbedingung des einen Milieus ist die Eingangsbedingung des nächsten.
Der organübergreifende Punkt ist, dass keine dieser Bilanzen „im Organ" geschlossen wird. Sie schließt sich an der Grenze, im Verhältnis zum angrenzenden Milieu. Das ist die Verallgemeinerung der Bilanz-Logik aus FORSCH-0111 §5a über die Psychedelika-Frage hinaus: Wo immer ein Stoff im Körper umgesetzt wird, ist der Ort der Bilanz nicht ein Eigentümer-Organ, sondern eine Grenze zwischen Bedingungsfeldern.
6 · Die methodische Grenze [B14]: Rahmen, nicht Ontologie
Hier liegt der Punkt, an dem das Werk gegen seine eigene Verführung gesichert werden muss. Die Biotop-Sicht ist eine Beschreibungsweise, ein Rahmen — nicht eine Ontologie. Sie ergänzt die Organ-Sicht, sie widerlegt sie nicht. Organe sind real. Ein chirurgischer Zugriff braucht die Organ-Sicht; ein Verständnis von Versorgung, Verteilung und Steuerung braucht die Biotop-Sicht. Es sind zwei Ebenen, und für die hier behandelte Frage ist die Biotop-Ebene die tragendere, nicht generell „die richtigere".
Diese Unterscheidung ist die B14-Disziplin: Es wird nicht behauptet, der Körper sei ein Biotop-System statt ein Organismus, sondern dass die Biotop-Betrachtung für die Modulations- und Versorgungsfrage mehr zeigt. Die Versuchung, von der Betrachtung zur Ontologie zu springen, ist real und in der Wissenschaft dokumentiert. Die Holobiont- und Hologenom-Debatte ist das einschlägige Beispiel. Das Konzept fasst Wirt plus Mikrobiom als funktionale Einheit; eine starke Lesart erhebt diese Einheit zur Selektionseinheit, zum Superorganismus. Genau diese starke Lesart ist kontrovers: Kritiker halten ihr entgegen, dass sie auf zu restriktiven Annahmen beruht und die tatsächliche Komplexität der Selektion in Wirt-Mikrobiom-Gemeinschaften verfehlt; die Selektion auf Ebene der symbiotischen Gemeinschaft solle nicht als Nullhypothese gelten (Douglas & Werren, „Holes in the Hologenome“, mBio 2016; in dieselbe Richtung Moran & Sloan, „The hologenome concept — helpful or hollow?”, PLOS Biology 2015). Selbst Verteidiger des Holobiont-Begriffs betonen, dass Holobionten keine Organsysteme und keine Superorganismen sind, da diese Begriffe das Genom nur eines Organismus voraussetzen (Bordenstein & Theis, PLOS Biology 2015).
Für dieses Werk folgt daraus eine doppelte Vorsicht. Erstens: Die Biotop-Betrachtung ist fruchtbar als Rahmen, ohne die ontologische Behauptung, der Körper sei „in Wahrheit" ein Ökosystem. Sie behauptet nicht, die Biologie habe etwas übersehen; sie wählt eine Beschreibungsebene, die für eine bestimmte Frageform mehr zeigt. Zweitens: Die Offenheit nach außen ist stofflich-topologisch gemeint, nicht als Verschmelzung oder Einheit mit der Umwelt. Beide Vorsichten sind dieselbe Disziplin, die im Strang „Transport als Rauschen unter Zwang" als Ebenen-Disziplin auftritt: keine Analogie über eine Grenze schmuggeln, ohne sie zu deklarieren. Die Biotop-Sicht sitzt auf der zellulär-kompartimentellen Ebene; sie darf nicht in die genetisch-evolutionäre Ebene kippen, wo die Holobiont-Ontologie ihre umstrittenen Ansprüche erhebt.
7 · Ertrag
Der Ertrag des Werks ist eine Beschreibungsweise mit drei festgehaltenen Sätzen. Erstens: Der Körper lässt sich für die Steuerungs- und Versorgungsfrage als System ineinandergeschachtelter Milieus beschreiben — Bedingungsfelder statt Zuständigkeiten. Zweitens: Innere und äußere Grenzen sind derselbe Typ Verhältnis, gefilterte Übergänge zwischen Milieus unterschiedlicher Offenheit; die Bewegung eines Stoffes ist eine Bilanz über eine Kette solcher Grenzen. Drittens: Diese Sicht ist ein Rahmen, keine Ontologie; ihre Grenze ist die B14-Disziplin und die Ebenentrennung, belegt an der Holobiont-Kontroverse. Ein vierter, in v1.3 ergänzt: Wo die Grenzraten bedingungsabhängig sind, kann die gekoppelte Bilanz kippen (Anhang A) — ein Verhalten, das die konstanten-Raten-, organ-additive Lesart nicht darstellen kann; genau hier ist die Biotop-Beschreibung mehr als eine Umbeschreibung.
Der Beitrag über die vorhandene Literatur hinaus liegt nicht in einem neuen biologischen Befund — Kompartiment-Topologie, Milieu-Begriff und Holobiont-Debatte sind etabliert. Er liegt in der Verknüpfung: die Übertragung von Canguilhems innen/außen-Symmetrie des Milieus auf die Versorgungs- und Bilanzfrage, die Behandlung aller Körpergrenzen als eine Klasse, und die explizite Sicherung dieser Beschreibungsweise gegen die ontologische Übertreibung, die in der Holobiont-Debatte dokumentiert ist.
8 · Offene Punkte
Drei Punkte bleiben für eine spätere Version offen, jeweils nach Literaturprüfung zu behandeln. v1.2 schärft die ersten beiden von offenen Fragen zu entscheidbaren Tests.
Erstens eine quantitative Fassung der gekoppelten Bilanzen über mehrere Milieus. Ein gangbarer Ansatz ist die Beschreibung als Kompartiment-Modell: Jedes Milieu ist ein Kompartiment mit Zustandsgröße (Konzentration), die Grenzen sind Übergänge mit Transferraten, und das gekoppelte System ist ein Satz von Bilanzgleichungen, in dem die Ausgangsgröße eines Kompartiments als Eingangsgröße des nächsten erscheint. Die Pharmakokinetik nutzt solche Mehrkompartiment-Modelle bereits. Die offene Frage — ob die Biotop-Lesart über deren deskriptiven Gehalt hinaus etwas hinzufügt — lässt sich entscheidbar machen statt sie zu behaupten. Das Kriterium: Sind die Transferraten konstant und ist das System linear, geht die Biotop-Lesart in die etablierte Pharmakokinetik auf und fügt formal nichts hinzu. Sie verdient sich ihren Platz genau dort, wo die Raten bedingungsabhängig sind — eingestellt durch den Zustand des angrenzenden Milieus (Albumin, pH, Sättigung eines Transporters) — so dass das gekoppelte System nichtlinear ist und zwischen stabilen Zuständen kippen kann (§3, vierter Punkt). In diesem Regime sitzt der Ort der Bilanz an der Grenze, nicht im Kompartiment-Inneren, und das Kippen ist eine Systemeigenschaft, die kein Modell mit konstanten Raten erfasst. Dieser Test ist nun ausgeführt (Anhang A). Ein minimales gekoppeltes Modell mit zustandsabhängigen Raten zeigt ein bistabiles Fenster und Hysterese — ein Kippen nach oben an der oberen Faltung und ein Zurückkippen an einer unteren — während der Grenzfall mit konstanten Raten für jeden Versorgungswert genau einen stabilen Zustand hat. Die Biotop-Lesart verdient sich ihren Platz also im nichtlinearen Regime und reduziert sich, ehrlich gesagt, im linearen auf die Pharmakokinetik. Die Unterscheidung ist entscheidbar und hier entschieden: Sie ist keine Umbeschreibung, wo immer die Grenzraten vom eigenen Zustand des Milieus abhängen.
Zweitens das Verhältnis zwischen der hier verwendeten Milieu/Biotop-Sprache und dem etablierten Begriff der ökologischen Nische (Hutchinson: Nische als n-dimensionaler Hyperraum der Existenzbedingungen). Beide fassen „Bedingungsfelder", aber die Nische ist auf eine Population oder Art bezogen, das Milieu auf ein Lebewesen oder Kompartiment. Dies ist bewusst als begrenzter Test gefasst, nicht als Programm: Die Voreinstellung bleibt die Ebenentrennung von §6. Der Test ist, ob die innere Grenze (Achse 1) sich in einem konkreten Fall als Übergang zwischen Nischen lesen lässt, ohne den Populationsbezug der Nische auf ein Kompartiment zu übertragen. Geht das nicht ohne diese Übertragung, wird die Nischen-Sprache hier beiseitegelegt. Die Beweislast liegt bei der Analogie, nicht gegen die Ebenentrennung — sonst droht genau die Ebenenverwischung, vor der §6 warnt.
Drittens ein Testfall außerhalb der Pharmakokinetik als Belastungsprobe der Verallgemeinerung. Geeignet erscheint die Immunabwehr an einer Grenzfläche: Die Schleimhaut ist ein Bedingungsfeld (Mukusschichten, antimikrobielle Peptide, sekretorisches IgA, pH), das die Annäherung von Mikroben reguliert, ohne sie als „Aufgabe eines Organs" zu erledigen. Hier ließe sich prüfen, ob die Verhältnis-statt-Eigentümer-Frageform auch dort trägt, wo nicht ein Stoff verteilt, sondern eine Population an einer Grenze kontrolliert wird.
Anhang A · §8.1-Modell — ausgeführter Test
Ein minimales, dimensionsloses gekoppeltes Milieu-Modell prüft, ob die Biotop-Lesart über ein Kompartiment-Modell mit konstanten Raten (Pharmakokinetik) hinaus etwas hinzufügt: dx/dt = J − g·x + V·xⁿ/(Kⁿ+xⁿ), mit x = Zustand des Ziel-Milieus, J = Versorgung über die Grenze (Kontrollparameter), g = konstante Clearance, V,K,n = bedingungsabhängiger Grenzterm (die Rate hängt vom eigenen Zustand des Milieus ab). Bei V=0 ist es der lineare Ein-Kompartiment-Fall (ein stabiler Zustand x*=J/g, kein Kippen). Bei V>0 und n≥2 entsteht ein bistabiles Fenster, und der Zustand zeigt Hysterese.
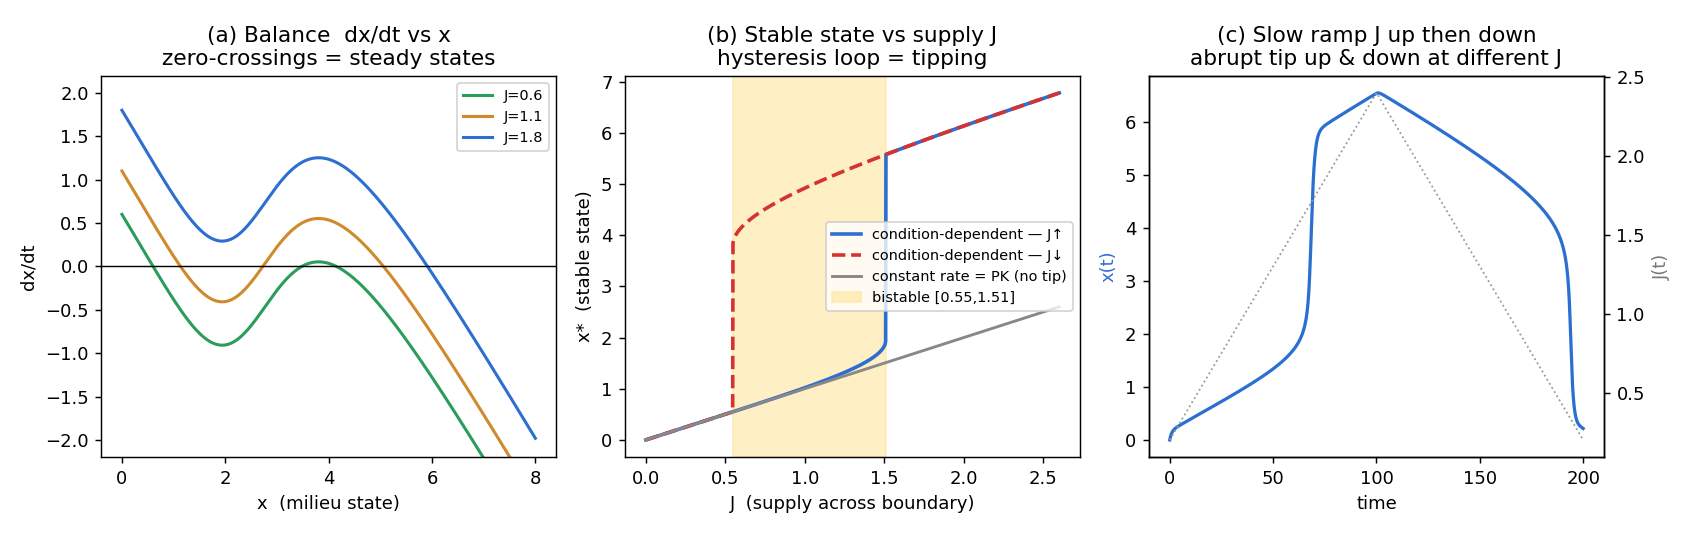
Das Kippen und seine Geschichtsabhängigkeit sind Systemeigenschaften, die kein Modell mit konstanten Raten reproduziert; sie treten genau dort auf, wo die Transferrate an der Grenze vom Zustand des angrenzenden Milieus abhängt. Dies illustriert, dass die Unterscheidung mathematisch real ist — kein Anspruch, dass eine bestimmte physiologische Grenze bistabil sei, was gemessene, zustandsabhängige Raten für einen konkreten Fall erforderte (der Immunabwehr-Testfall, §8 dritter Punkt, ist der natürliche Kandidat). Reproduzierbar: models/tipping_model_FORSCH-0211.py.
9 · KNOTEN
Dieses Werk verselbständigt FORSCH-0111 §5b (Keimzelle, bleibt versionsabgeschlossen) und knüpft an FORSCH-0111 §5a (Bilanz-Ort), FORSCH-0115 (Leber-Gehirn, Carrier/Schranke), FORSCH-0061 (Aneignung) sowie an den Strang „Transport als Rauschen unter Zwang" (Lehrbuch-Kritik, Ebenen-Disziplin, FORSCH-0212+, in Arbeit) an. Über den Milieu-Begriff (Canguilhem → Foucault) besteht ein Knoten zum Grenzregime-Cluster (FORSCH-0119 ff., Sicherheit/Milieu). Die Verhältnis-statt-Eigentümer-Frageform verbindet das Werk mit dem ρ/δ-Strang (FORSCH-0083) als dessen Anwendung auf die Beschreibung des Körpers.
Quellen
- Mark Welch JL, Hasegawa Y, McNulty NP, Gordon JI, Borisy GG (2017). Spatial organization of a model 15-member human gut microbiota established in gnotobiotic mice. PNAS 114(43): E9105–E9114. DOI: 10.1073/pnas.1711596114. — Kolon als unvollständig durchmischter Bioreaktor (Maus-Modell).
- Zaborin A, Penalver Bernabe B, Keskey R, Sangwan N, Hyoju S, Gottel N, Gilbert JA, Zaborina O, Alverdy JC (2020). Spatial Compartmentalization of the Microbiome between the Lumen and Crypts Is Lost in the Murine Cecum following the Process of Surgery. mSystems 5(3): e00377-20. DOI: 10.1128/mSystems.00377-20. — Verlust der Lumen/Krypten-Kompartimentierung bei physiologischem Stress.
- Douglas AE, Werren JH (2016). Holes in the Hologenome: Why Host-Microbe Symbioses Are Not Holobionts. mBio 7(2): e02099-15. DOI: 10.1128/mBio.02099-15. — Kritik der Selektionseinheit-Lesart; Hologenom nicht als Nullhypothese.
- Moran NA, Sloan DB (2015). The Hologenome Concept: Helpful or Hollow? PLOS Biology 13(12): e1002311. DOI: 10.1371/journal.pbio.1002311. — Separate Kritik des Hologenom-Konzepts.
- Bordenstein SR, Theis KR (2015). Host Biology in Light of the Microbiome: Ten Principles of Holobionts and Hologenomes. PLOS Biology 13(8): e1002226. DOI: 10.1371/journal.pbio.1002226. — Holobionten sind keine Organsysteme/Superorganismen (Verteidigung mit Grenzen).
- Canguilhem G (2008 [frz. 1965]). The Living and Its Milieu. In: Knowledge of Life (Übers. Geroulanos & Ginsburg), Fordham University Press, S. 98–120. — Milieu als innen/außen-symmetrisches Verhältnis (Organismus als Milieu der Teile); geprägt von Uexkülls Umwelt.
- Canguilhem G (1991 [frz. 1966]). The Normal and the Pathological. Zone Books. — Normalität als Anpassungsfähigkeit an ein veränderliches Milieu.
- Foucault M (2007 [Vorlesung 1977–1978]). Security, Territory, Population. — Politischer Milieu-Begriff im Anschluss an Canguilhem (Knoten, nicht entfaltet).
WERKSTATTLINIE v2.0 — SACHLICHKEIT. Lehrbuch-Verhältnis erfüllt (Literaturprüfung vor allen Markierungen). Vor Zenodo: E28-Spurentrennungs-Scan (Exit 0 erforderlich), DOI-Endverifikation (v1.1 erledigt: 5 Quellen verifiziert), Nummer final 0211.
© 2026 Thomas Schüller. Lizenziert unter CC BY 4.0.
ORCID: 0009-0003-9799-6747 · Kontakt: forschung@tschueller.com · Werk-ID: FORSCH-0211 · Version 1.4